Otsing sellest blogist

UUS!!!

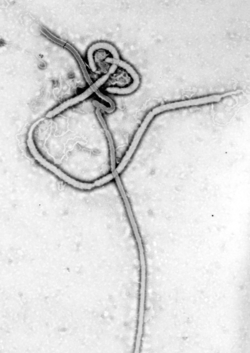
Ebola viirus

Blogi, mis räägib kõigest, mis on Leonhardile oluline ja/või huvitav. Kommenteerige, tellige, lugege, nautige ja õppige. Ebola viirus  ehk  ...

Kuvatud on postitused sildiga Geneetika. Kuva kõik postitused

esmaspäev, 19. oktoober 2026

Kromantiin ja kromosoomid

Blogi, mis räägib kõigest, mis on Leonhardile oluline ja/või huvitav. Kommenteerige, tellige, lugege, nautige ja õppige.

Kromatiin ja kromosoomid

Kromatiini all mõistetakse rakutuumas olevat DNA-d, mis on seotud valkudega. DNA-ga seonduvaid valke on laias laastus kahte sorti: struktuursed ja regulatoorsed. Kõige paremini on uuritud struktuursed valgud histoonid, mis esinevad kõigil eukarüootidel. Histoonid on suhteliselt väikesed valgud suure hulga positiivselt laetud aminohapetega (Lys, Arg). Histoone on 5 tüüpi, mis jagunevad kahte rühma:
  • nukleosoomsed histoonid (H2A, H2B, H3, H4)
  • histoon H1.

    H3 ja H4 on evolutsioonis väga konserveerunud valgud, s.t. et fülogeneetiliselt väga kaugetel liikidel on erinevused valgu primaarjärjestuses tühised. Näit. veise ja herne H4 primaarjärjestuses on ainult 2 aminohappe asendust.

    Inimese haploidne genoom sisaldab ca 3 miljr. nukleotiidi paari, mis on jagatud 24-ks kromosoomiks (22 erinevat autosoomi ja 2 erinevat sugukromosoomi). Kui inimese kromosoomid lahti harutada, siis DNA molekulide pikkus oleks 1.7...8.5 cm. Kuidas nii pikad DNA molekulid on kokku pakitud, et nad raku tuuma ära mahuks ja mitoosi anafaasi ajal sassi ei läheks, on teadlasi huvitanud juba ammu.

    Kõikides eukarüootides on DNA kaksikahela esimeseks kõrgemaks organiseerituse astmeks nn. nukleosoomne struktuur. Nukleosoomi südamiku moodustavad nukleosoomsed histoonid, mida on igat molekuli 2 eksemplari, seega on nukleosoomi südamikus kokku 8 histooni molekuli. Ümber nulkeosoomi südamiku on keritud 166 bp pikkune DNA lõik. Kahe nukleosoomi vahele jäävat DNA lõiku nim. linker-DNA-ks, sinna seondub histoon H1, mis vastutab DNA pakkimise eest järgmisse kõrgema järgu struktuuri (30 nm kiud). Kui kogu kromosoom oleks pakitud 30 nm kiududesse, siis keskmine kromosoom oleks 1 mm pikkune. See ületaks sadu kordi rakutuuma mõõtmeid. Suur osa kromatiini rakutuumas ongi kokku pakitud kõrgema järgu struktuuridesse. Kuidas kõrgema järgu struktuurid moodustuvad, pole täpselt teada.

    Kromatiin raku tuumas on kahes eri seisundis:

  • 10 % aktiivne (sisaldab DNA-d, mida antud rakus transkibeeritakse);
  • 90 % inaktiivne.

    Osa inaktiivsest kromatiinist on rakutuumas tugevasti kokku pakitud ja moodustab nn. heterokromatiini. See avastati 1930-ndatel aastatel kui tugevasti kondenseerunud kromatiini osa. Heterokromatiinis on kromatiin pakitud kõrgema järgu struktuuridesse, mida ülejäänud kromatiin saavutab ainult mitootilise jagunemise ajal. Heterokromatiin lokaliseerub tuuma ümbrise läheduses ja paistab elektronmikroskoobis hästi tumedana. Molekulaarbioloogilised uuringud on näidanud, et enamik heterokromatiini koostises olevat DNA-d on kõrgkordus DNA, mida praktiliselt üldse ei transkribeerita. Mitte kõik parasjagu inaktiivsed geenid ja mittetranskribeeritavad DNA piirkonnad pole nähtavad heterokromatiinina, heterokromatiin on üks osa inaktiivsest kromatiinist.

    Huvitav näide hetrokromatiniseerumise kohta, millel on märkimisväärsed geneetilised efektid, on X-kromosoomi heterokromatiniseerumine e. X-inaktivatsioon. Kõikide emaste imetajate teine X-kromosoom kondenseerub ning seal olevad geenid inaktiveeruvad. X-kromosoomi inaktiveerumine algab kromosoomi kindlast piirkonnast, inaktivatsiooni tsentrist,ja see levib lineaarselt üle kogu kromosoomi. X-kromosoomi kondenseerumine toimub praktiliselt kõikides emaslooma somaatilistes rakkudes ning see on nähtav rakutuumas tumeda, tuuma membraani läheduses paikneva struktuurina, mida nim. Barr'i kehakeseks. Kanada teadlane M.L. Barr kirjeldas 1949.a. esimesena seda struktuuri. Alguses ei teatud, et Barri kehake on pärit X-kromosoomist, selle olemuse kohta olid eri hüpoteesid. 1959.a. näidati (Ohno jt.), et Barri kehake moodustub ühest X-kromosoomist. 1961.a. püstitas Briti tsütogeneetik Mary Lyon hüpoteesi, et ühe organismi eri rakkudes X-kromatiin võib pärineda nii isa kui ema X-kromosoomist ja see kromosoom on funktsionaalselt inaktiivne. Seetõttu X- kromosoomi inaktivatsiooni nim. ka laionisatsiooniks. X-inaktivatsioon toimub varajases embrüonaaleas. Kumb X-kromosoom inaktiveerub, kas isalt (Xp) või emalt (Xm) pärinev, see toimub juhuslikult. Seega emasembrüo on mosaiikne X- kromosoomi suhtes: osades rakkudes on aktiivne Xp, osades aga Xm. Kõik tütarrakud, mis tekivad edasiste jagunemiste käigus, säilitavad aktiivsena selle X-kromosoomi, mis oli aktiivne ka nende emarakus. Seega täiskasvanud emasloom on samuti mosaiikne X-kromosoomi suhtes. X-inaktivatsiooni efekt on nähtav näiteks karva värvuse mosaiiksusena. Näit. emased hiired, kes kannavad X-liitelist mutatsiooni, mis avaldub karva värvuses ning kes on selle mutatsiooni suhtes heterosügootsed (ühes X- kromosoomis on normaalne, teises aga mutantne geen), on karvkate laiguline. Isastel on karva värvus ühtlane, vastavalt sellele, kas nende ainuke X-kromosoom kannab normaalset või mutantset geeni. Seega tänu X-inaktivatsioonile kõik geenid,mis lokaliseeruvd X-kromosoomis ja on heterosügootses seisundis, ekspresseeruvad mosaiikselt. X-inaktivatsioon pole siiski täiesti pöördumatu. Meioosi läbimisel reaktiveeritakse kondenseerunud X-kromosoom ning tekkinud munarakkudes on nii isalt kui emalt päritud X-kromosoomid jällegi vôrdselt aktiivsed.

    Aktiivne kromatiin erineb ülejäänust selle poolest, et ta pole nii tugevasti kokku pakitud ning seetõttu on ta kergemini kättesaadav nukleaasidele (DNase I). Ta erineb ka biokeemiliselt muust kromatiinist. Näit. H1 on aktiivse kromatiiniga seotud väga nõrgalt või puudub sealt hoopis; nukleosoomsed histoonid on tugevasti atsetüleeritud, mis vähendab nende positiivset laengut ja seega DNA-ga seostumise tugevust. Peale selle on veel palju teisi valke, mis seostuvad aktiivse kromatiiniga järjestus-spetsiifiliselt (regulaatorvalgud). Järjestus-spetsiifiliselt DNA-ga seostuvad valgud leiti kõigepealt bakteritel ( E. coli lac-operoni repressorvalk jt.) Eukarüootidel olid esimesteks taolisteks valkudeks SV40 viiruse T-antigeen ning steroid-hormooni retseptorid. Praeguseks tuntakse suurt hulka DNA-ga järjestusspetsiifiliselt seonduvaid valke, need kujutavad endast transkriptsioonifaktoreid (kontrollivad geenide ekspressiooni) või DNA replikatsiooni reguleerivaid valke.

    Kromatiini struktuur ja geeni ekspressioon

    Milliselt kromatiini organiseerituse tasemelt toimub transkriptsioon? Kas see toimub DNA nukleosoomselt struktuurilt või keritakse DNA transkriptsiooni ajaks nukleosoomi südamiku küljest lahti? Elektronmikroskoopiliselt on näidatud, et nukleosoomne struktuur on DNA-l nii vahetult enne kui ka kohe pärast mingi lõigu transkribeerimist. Tõenäoliselt toimub mingi ajutine konformatsiooniline muutus, mille tulemusel side histoonide ja DNA vahel nõrgeneb ning transkriptsioonifaktorite seondumine saab võimalikuks. Lihtsustatud mudeli järgi struktuursed valgud ja transkriptsioonifaktorid konkureerivad DNA-ga seostumise suhtes, kusjuures struktuursed valgud takistavad nendega seoses oleva DNA kättesaadavust transkriptsiooni masinavärgile. Katsed näitavad, et kui näit. geeni promootorpiirkond on nukleosoomi koostises, siis on transkriptsioon kõvasti alla surutud. Kui in vitro tingimustes lisada DNA-le histoone, et moodustuks nukleosoomne struktuur, surutakse transkriptsioon alla. Eriti tugevalt mõjub H1 lisamine. Aktiivselt transkribeeritavad geenid on nõrgalt seotud H1-ga või see puudub hoopis. Teatud piirkonnad kromosoomides (DNA ahelas) on nukleosoomi-vabad, vaatamata sellele, et nad on sadu nukleotiidpaare pikad. Need nn. nukleaasi-tundlikud piirkonnad vastavad geeni regulatorpiirkondadele.

    Kromatiini struktuuri muutused rakutsüklis

    Kui rakk alustab mitootilist jagunemist, kondenseerub kromatiin ning individuaalsed kromosoomid muutuvad valgusmikroskoobis nähtavaks. Peale mitoosi lõppu kromatiin dekondeseerub uuesti. Kondenseerumine-dekondenseerumine on täpselt reguleeritud, kusjuures oluline on H1 pöörduv fosforüleerumine. Mitootiliselt jagunevatest rakkudest tehtud ekstrakt põhjustab interfaasi rakkudest võetud tuumades kromatiini kondenseerumise. See näitab, et jagunevas rakus on lahustuvad faktorid, mis käivitavad kromatiini kondenseerumise protsessi. Kromatiini kondenseerumisega kaasneb ka tuuma ümbrise lagunemine. On näidatud, et tuuma sisemembraaniga seotud lamiinid (vähemalt osa nendest) seostuvad kromatiiniga.

    Kromatiini paiknemine rakutuumas

    Pärast mitoosi lõppu dekondenseerub kromatiin, kuid rakutuumas pole ta juhuslikult organiseerunud; ta on igale rakutüübile iseloomulikult organiseerunud. Kasutades uusimaid uurimismeetodeid on õnnestunud määrata interfaasi tuumas tervete üksikute kromosoomide lokalisatsiooni, kromosoomi osade või üksikute geenide lokalisatsiooni. Lokalisatsioon muutub dünaamiliselt vastavalt rakutsükli kulgemisele. Kromatiini struktuurse organisatsiooni jaoks on väga oluline tuuma ümbris. Kromatiin kinnitub tuumaümbrisele, tõenäoliselt toimub see lamiinide vahendusel. Fakt, et DNA replikatsioon ei alga enne intaktse tuumaümbrise moodustumist, näitab, et tuumaümbrise ja kromatiini vahel on oluline seos.

    Kas ka tuumas on selline võrgustik, nagu tsütoplasmas olev tsütoskelett, mille abil tuuma komponendid on organiseeritud? Paljud teadlased arvavad, et on. Tuumamaatriksiks nimetatav võrgustik on defineeritud kui teatud lahustumatu osa, mis jääb järgi peale mitmete ainetega töötlemist. Osa tuumamaatriksi valke seoastub teatud DNA järjestustega. See arvatakse aitavat organiseerida kromatiini rakutuumas, lokaliseerida üksikuid geene kindlatesse kohtadesse, reguleerida transkriptsiooni ja DNA replikatsiooni.

    Kromosoomid

    Termini kromosoom võttis kasutusele Waldeyer 1888.a. Kromosoomid ise olid küll leitud juba 40 aastat varem. 1902.a. püstitas Sutton hüpoteesi, et kromosoomid kannavad Mendeli poolt vaadeldud sõltumatult lahknevaid tunnuseid määravaid geene.

    Mittejagunevates rakkudes kromosoomid üldjuhul pole nähtavad, mitoosi või meioosi ajal nad aga kondenseeruvad ja muutuvad valgusmikroskoobis nähtavaks. Peaaegu kõik tsütogeneetilised uuringud on tehtud kondenseerunud metafaasi kromosoomidega, mis on saadud kas mitootiliselt jagunevatest somaatilistest rakkudest või meiootiliselt jagunevatest gameetide lähterakkudest. Raku jagunemise ajal kujutab kromosoom endast duplitseerunud struktuuri, koosnedes kahest õdekromatiidist. Kumbki õdekromatiid kujutab endast ühte katkematut DNA kaksikahekat. Metafaasi kromosoomide arv, suurus ja kuju on näitajad, mis iseloomustavad karüotüüpi. Karüotüüp on igale liigile iseloomulik. Lähedastel liikidel on tihti väga sarnased karüotüübid (inimene - inimahvid), kuid mõnikord võivad ka väga lähedastel liikidel olla täiesti erinevad karüotüübid (näit. muntjaki hirvede lähedastel liikidel). Nende kromosoomide arv ja kujud on täiesti erinevad, kuigi DNA kogu hulk genoomis on peaaegu sama. See näitab, et sarnane geneetiline materjal võib olla organiseerunud väga erineval moel.

    Selleks, et kromosoom saaks säiluda ühest raku jagunemisest teise, peab ta sisaldama järgmisi funktsionaalseid piirkondi:
  • tsentromeer (primaarsoonis)
  • kaks telomeeri
  • replikatsiooni alguspunktid (origins of replication).

    Tsentromeer

    Tsentromeer on kromosoomi unikaalne järjestuselement. Pärmseentel näit. 200 bp, primaatidel aga mitu milj. bp, mis koosneb tandeemselt korduvatest järjestusetest (170 bp). Tsentromeerse DNA-ga seostuvad teatud kindlad valgud, neid tuntakse 15-20 (tuntumad vaqlgud CENP-A, CENP-B). Osa valke on seotud tsentromeeriga kogu aeg, osa seondub mitoosi teatud faasides. CENP-A on 17 kDa; tema teatud piirkonnad on homoloogsed H3-ga. Tsentromeeri ülesanne on hoida koos tütarkromatiide kuni mitoosi anafaasini (või meioosi II jagunemise anafaasini). Tsentromeeri külge moodustub jagunevas rakus spetsiaalne valguline struktuur - kinetohoor. Selle külge kinnituvad omakorda mikrotuubulid, ning saab toimuda kromosoomide lahknemine anafaasis. Kinetohoori moodustumiseks on vajalik CENP-valkude olemasolu. CENP-A ja CENP- B vastaste monokloonsete antikehade süstimisel rakutuuma ei saa moodustuda täisväärtuslik kinetohoor ning kromosoomide lahknemist ei toimu.

    Telomeer

    Telomeer on kromosoomi otstes leiduv järjestuselement, mis kujutab endast 6-8 bp pikkuseid tandeemselt korduvaid järjestusi. Neid järjestusi lisab DNA ahela 3` otsa spetsiaalne RNA-d sisaldav ensüüm telomeraas. Selle RNA komponent sisaldab telomeerse DNA-ga komplementaarset järjestust, mis toimib nagu matriits vastavate telomeersete järjestuste sünteesimisel. Telomeerid võimaldavad kromosoomide replitseerimise kogu ulatuses. DNA replikatsiooni spetsiifikast tulenevatest põhjustest ei saa DNA ahela 3' otsa terminaalset osa replitseerida. Selleks ongi seal vajalikud nn. telomeersed järjestused, mida uuendatakse pidevalt. Kui telomeere ei uuendataks, jääks DNA molekul iga replikatsioonitsükliga otstest järjest lühemaks. Telomeersed järjestused on eri organismidel väga sarnased:

    inimene (TTAGGG)n
    Arabidopsis (TTTAGGG)n
    Trypanosoma (TTAGGG)n

    Telomeeridega on arvatavasti seotud nn. “kellamehhanism”, mis takistab kõrgemate organismide normaalsete rakkude piiramatut jagunemist. Iga jagunemistsükliga jäävad telomeerid järjest lühemaks ning teatud kriitilisest piirist alates raku jagunemine seiskub. Need rakud, mis peavad aga organismis kogu aeg paljunema (näit. idurakud, vereloome tüvirakud) lahendavad küsimuse sellega, et neis aktiveeritakse ensüüm telomeraas. See uuendab pidevalt telomeere. Näit. inimese idurakkudes on 15-20 kb telomeerseid kordusi kromosoomide otstes. Enamikes somaatilistes rakkudes on telomeraas represseeritud ning need rakud omavad ainult piiratud jagunemispotentsiaali.

    Miks rakk lõpetab jagunemise, kui telomeerid on lühenenud või hoopis kadunud? Kõikides normaalsetes rakkudes toimib rakujagunemise kontrollsüsteem, mille käivitab DNA kahjustus. S.t., et kui DNA ahel (kromosoom) mingil põhjusel kuskilt katkeb ja tekib vaba DNA ots, siis tekitab see signaali, mis peatab rakujagunemise. Sellise kontrollsüsteemi olemasolu rakkudes on tõestatud. Siit tulenebki üks hüpotees telomeeride funktsioneerimise kohta: nad katavad kromosoomi otsi, et raku kontrollmehanism ei tõlgendaks kromosoomi otsi kui DNA ahela katkemiskohti.

    Teise hüpoteesi kohaselt paiknevad need geenid, mis osalevad rakujagunemise kontrollimisel, vahetult telomeeride järel. Kuna on teada, et telomeeride kõrval olevad geenid on tavaliselt inaktiivsed, siis on arusaadav, et telomeeride lühenemisel või kadumisel aktiveeritakse need rakujagunemist kontrollivad regulaatorgeenid.

    Telomeeride ja telomeraasi küsimused on kasvava tähelepanu all vähitekke seisukohalt. Kuna vähirakkudes on sageli kõrge telomeraasi aktiivsus (seda on näidatud 85%-l kasvajatest), siis arvatakse, et see on üks põhjus, miks vähirakud on piiramatu jagunemisvõimega. Et osades kasvajates pole täheldatud telomeraasi kõrgenenud aktiivsust, siis see võib olla seotud kasvajate erineva käitumisega: madala telomeraasse aktiivsusega kasvajad võivad olla vähem agressiivsed. Telomeraasi loodetakse ära kasutada kui sobivat märklauda vähivastastele ravimitele.

    Telomeere ja telomeraasi on põhiliselt uuritud ainuraksetel, (eriti Tetrahymena’l), sest neil on pikad telomeerid ja kõrge telomeraasne aktiivsus.

    Replikatsiooni alguspunkt. (Replication Origin)

    See on teatud järjestuselement kromosoomis, kust algab DNA replikatsioon. Replikatsiooni alguspunktina funktsioneerivaid järjestusi on uuritud väikeste tsirkulaarsete DNA molekulide abil, mida on võimalik plasmiidina kasvatada näit. pärmirakus. Et plasmiid saaks rakus replitseeruda, peab tal olema funktsionaalne replikatsiooni alguspunkt. Deleteerides uuritavast plasmiidist teatud järjestusi, on võimalik näidata, milline osa sellest on oluline tema replikatsiooniks.

    Kui palju on replikatsiooni alguspunkte inimese kromosoomides? Keskmine inimese kromosoom koosneb 150 milj. aluspaari pikkusest katkematust DNA ahelast. Kui DNA replikatsioon inimese kromosoomis algaks ühest kohast, siis vajamineva aja saab välja arvutada järgmiselt: Replikatsiooni kahvel liigub kiirusega ca 50 nukleotiidi sekundis, ühest alguspunktist tekib 2 replikatsiooni kahvlit, mis liiguvad vastupidistes suundades, seega summarne kiirus DNA replikatsioonile tuleb ca 100 nukleotiidi sekundis. Keskmise inimese kromosoomi replitseerimiseks ühe repl. alguspunkti abil kuluks seega aega 1,5 milj. sek ehk ca 400 h ehk ca 16.6 ööpäeva. Tegelikult toimub asi palju kiiremini. Tüüpilisel kõrgemal eukarüootsel rakul on S-faasi pikkus 8 tundi.

    Replikatsiooni alguspunkte on võimalik nähtavaks muuta, lisades S-faasis olevale rakule kasvukeskkonda lühiajaliselt triitiumiga märgistatud tümidiini. See muudab märgistamise ajal sünteesitud DNA radioaktiivseks. Seejärel rakud lüüsitakse, eraldatakse DNA ja pannakse alusklaasile. Kattes preparaadi fotoemulsiooniga, on peale ilmutamist radioaktiivsed kohad nähtavad hõbedagraanulitena (tavaline fotokeemiline reaktsioon). Sellisel moel on näha, et ühel kromosoomil liigub palju replikatsiooni kahvleid. Peale selle on näha, et osa replik. alguspunkte paikneb tihedasti koos, klastritena, teatud piirkondades DNA molekulis, kromosoomi teistes osades nad aga puuduvad. Need klastrid kannavad nimetust replikatsiooni ühik. S-faasis olevas rakus osa replik. ühikuid aktiveeritakse S-faasi alguses, osa aga lõpus. On teada, et tugevasti kokku pakitud nn. heterokromatiin on see osa kromatiinist, mis replitseeritakse S-faasi lõpus.

  • teisipäev, 13. oktoober 2026

    A-tüüpi gripiviiruse alatüüp H5N1

    Blogi, mis räägib kõigest, mis on Leonhardile oluline ja/või huvitav. Kommenteerige, tellige, lugege, nautige ja õppige.

    A-tüüpi gripiviiruse alatüüp H5N1

    A-tüüpi gripiviiruse alatüüp H5N1 ehk H5N1 (inglise Influenza A virus A/H5N1) on gripiviiruste alamliik.

    A-tüüpi gripiviirus alatüüp H5N1
    Värvitud TEM pilt H5N1-st (kuldne) epiteelirakkudes (rohelised) (Allikas: Dr. Erskine Palmer).
    Värvitud TEM pilt H5N1-st (kuldne) epiteelirakkudes (rohelised) (Allikas: Dr. Erskine Palmer).
    Taksonoomia
    RiikViirused Virus
    SugukondOrthomyxoviridae
    PerekondA-tüüpi gripiviirus
    LiikA-tüüpi gripiviirus
    AlamliikH5N1

    Patogeensus

    A-tüüpi gripiviiruse alamliiki H5N1 on peetud H5N1-linnugripi tekitajaks algselt lindudel ja hiljem veel mitmetel loomaliikidel (tiigritel, kassidel, inimesel).

    Inimesi on üsna pika peiteajaga ja suure suremusega (50–60%) linnugripi A(H5N1)-inimviirus nakatanud alates 1997.

    A -tüüpi gripiviiruse alamliik H5N1 nakatab lümfoid(-immuun)süsteemi rakke.

    kolmapäev, 30. september 2026

    RNA-viirused

    Blogi, mis räägib kõigest, mis on Leonhardile oluline ja/või huvitav. Kommenteerige, tellige, lugege, nautige ja õppige.

    RNA-viirused on viirused, mille genoomiks on RNA (ribonukleiinhape). Mõnede viiruste genoom on üheahelaline RNA (ssRNA), teistel kaheahelaline RNA (dsRNA). Üheahelaline RNA on kas plussahelaline (samapidine mRNA-ga) või miinusahelaline (vastupidine mRNA-le). Leidub ka viirusi, mille genoom on osaliselt plussahelaline ja osaliselt miinusahelaline. Neid kutsutakse ambisense-viirusteks.

    Lehmaherne (Vigna sinensis) mosaiigiviiruse ikosaeedriline kapsiid

    Enamiku RNA-viiruste infektsioonitsükkel toimub raku tsütoplasmas, kuid on ka erandeid (näiteks gripiviirus). Viirusi, millel esineb infektsioonitsüklis ka DNA etapp, ei loeta RNA-viirusteks.

    Iseloomustus

    Polioviirus elektronmikroskoobis

    Plussahelalised RNA-viirused

    Plussahelalised RNA-viirused on enamasti ikosaeedrilise kapsiidiga. Mõnedel on ka rakumembraan (envelope). Virionide diameeter on ligikaudu 30–70 nm (nanomeetrit). Nende genoomid on keskmise suurusega, 7000 – 12 000 nukleotiidi, ja kodeerivad keskmiselt kümmet valku. Nende seas on viirusi, mis põhjustavad haigusi ka inimestel, näiteks entsefaliit, hepatiit, polüartriit, kollapalavik ja tavaline külmetus. Lisaks nakatavad nad ka põllukultuure, baktereid, seeni ja putukaid.

    Miinusahelalised RNA-viirused

    Miinusahelalistel RNA-viiruste kapsiid võib olla nii ikosaeedriline kui ka filamentne. Mõlemat tüüpi kapsiidid on kaetud membraaniga. Ikosaeedriliste kapsiidide diameeter on 100–300 nm, filamentsete diameeter 80 nm ja pikkus 800 nm. Mõnedel sugukondadel on genoom segmenteerunud (virionis on mitu RNA molekuli). Genoomi pikkuseks on tavaliselt 10–19 tuhat nukleotiidi. Nakatavad ainult loomseid organisme ja mõnda üksikut taime. Põhjustavad inimestel raskeid haigusi, näiteks gripp, leetrid, marutõve entsefaliit ja mumps.

    Kaheahelalised RNA-viirused

    Kaheahelalistel RNA-viirustel on tavaliselt kahe- või kolmekihiline ikosaeedriline kapsiid, mille diameeter on 60–85 nm. Nende genoom on samuti segmenteerunud, neil on kuni 12 RNA fragmenti. Genoomi kogupikkus on 18–24 tuhat aluspaari. Siia rühma kuuluvad rotaviirused, mis põhjustavad väikelastel gastroenteriiti.

    Infektsioon

    Rotaviiruse rekonstruktsioon

    Plussahelalised RNA-viirused

    Esimene sündmus pärast viiruse genoomi sisenemist rakku on translatsioon. Kuna rakus ei ole RNA-st sõltuvat RNA polümeraasi (RdRp), peab viirusel kindlasti olema geen, mis seda kodeerib, vastasel juhul ei saaks viiruse genoom replitseeruda. Järgmisena sünteesib RdRp antigenoomse RNA ehk miinusahela. Miinusahel on matriitsiks uutele viiruse genoomidele, sest temalt saab uuesti sünteesida plussahela. Plussahelaid kasutatakse replikatsiooniks, translatsiooniks või nad pakitakse virioni. Virionid väljuvad rakust pungumise kaudu.

    Miinusahelalised RNA-viirused

    Virion siseneb rakku endotsütoosi või fusiooniga. Pärast rakku jõudmist ei saa viiruse genoomi kohe transleerida, sest translatsioon saab toimuda ainult positiivselt RNA ahelalt. Seetõttu on vaja, et viirusel oleks kapsiidis kaasas oma RdRp, mis sünteesiks positiivse mRNA ahela. Genoomi ei pakita kapsiidist täielikult lahti, vaid see jääb seotuks mõne kapsiidivalguga. See on vajalik, et saaks kapsiidi pakkida erineva pikkusega RNA-sid, ja et oleks võimalik eristada genoomset RNA-d teistest sama pikkusega suvalistest RNA-dest. Lisaks kaitseb see RNA-d raku kaitsemehhanismide eest (näiteks RNA interferents). Pärast mõnda translatsiooni saab viiruse genoomilt kodeerida vcRNA, mis on matriitsiks uutele viiruse genoomidele. Uued genoomid seonduvad kohe pärast sünteesi kapsiidivalkudega. Uued virionid väljuvad rakust pungumise kaudu.

    Kaheahelalised RNA-viirused

    Rakku sisenemisel eemaldatakse viirusel kõige välimine kapsiidikiht. See aktiveerib partikli sisemuses transkriptsiooni. Sarnaselt miinusahelaliste RNA-viirustega pakivad ka kaheahelalised RNA-viirused oma RdRp kapsiidi kaasa. Samuti ei pakita nende genoomi kapsiidist täielikult lahti. Tekkinud mRNA saadetakse partiklist välja ning sellelt sünteesitakse valke. Mõned mRNAd jäävad pärast translatsiooni viiruse valkudega seotuks ja moodustavad kompleksi, millest saab alguse uue genoomi süntees. Juurde sünteesitakse ainult miinusahel. Uued virionid lahkuvad rakust raku lüüsimise teel.

    Patogeensus

    Patogeensus ei ole viirusele vajalik omadus, enamik viirusi replitseerub peremehes asümptomaatiliselt (ei tekita sümptomeid). Patogeensetel viirustel on infektsioonitsüklis mitu kriitilist punkti, mis määravad viiruse põhjustatud haiguse iseloomu.

    • Sisenemine – toimub tavaliselt naha, hingamisteede, silmade, seedetrakti või urogenitaaltrakti kaudu.
    • Primaarne replikatsioon – tihti määrab see etapp, kas haigus on lokaalne või levib süsteemse infektsioonina.
    • Levik peremehes – viirus saab peremehes levida rakust rakku, vere või närvisüsteemi kaudu.
    • Raku/koe tropism – viiruse võime nakatada erinevaid rakke ja kudesid. Määrab suuresti haiguse lokalisatsiooni.
    • Peremehe immuunvastus – mõjutab oluliselt viiruse infektsiooni efektiivsust.
    • Sekundaarne replikatsioon – toimub kudedes, mida viirus on võimeline nakatama. Kui peremehe immuunsüsteem jõuab viiruse enne hävitada, siis tavaliselt haigust ei teki.
    • Rakkude ja kudede kahjustamine – paljud viirused modifitseerivad peremehe replikatsiooni, transkriptsiooni ja translatsiooni jaoks vajalikke ensüüme, kofaktoreid ja substraate, mis võib hiljem rakule saatuslikuks saada. Vähesed viirused lüüsivad raku, mis tavaliselt põhjustab peremehes põletikku. Leidub ka selliseid viirusi, mis rakule surmavalt ei mõju.
    • Persistentsus vs tervenemine – kui peremehe immuunsüsteem ei saa viirusest jagu, jääb viirus kas persistentselt peremeesorganismi või tapab ta. Kui peremehe immuunsüsteem saab viirusest jagu, kaob peremehel haigus.

    Plussahelalised RNA-viirused

    Koroonaviiruse virionid elektronmikroskoobi all

    SARSi koroonaviirus

    SARS-CoV levib tavaliselt nahkhiirtel, kuid 2002. aasta sügisel puhkes epideemia, mis algas Hiinast, ka inimeste seas. SARS (severe acute respiratoty syndrome) on ebatüüpiline kopsupõletik, mida iseloomustavad kõrge palavik, lihasevalu ja lümfofeenia (vähenenud lümfisõlmede arv). Epideemia lõppes 2003. aasta suvel. Kokku haigestus 8098 inimest, kellest 774 suri. Täheldati, et lapsed talusid haigust tunduvalt paremini kui täiskasvanud. Vanurite seas oli letaalsus kuni 50%.

    Lääne-Niiluse viirus

    Lääne-Niiluse viirus (inglise West Nile virus) avastati 1999. aastal, kui toimus haiguspuhang New Yorgis. Haigestus 62 inimest, kellest seitse suri entsefaliiti. Samal ajal suri ka arvukalt linde. Järgneva kuue aasta jooksul levis viirus üle kogu USA ja jõudis ka Kandasse. Kokku haigestus üle 20 000 inimese, kellest 800 suri neuroloogiliste tüsistuste tagajärjel. Arvatakse, et viirus jõudis USA-sse nakatunud sääsega, kes oli lennukisse lõksu jäänud.

    Dengeviirus

    Dengeviirusest põhjustatud lööve

    Dengeviirust kannavad edasi sääsed, põhjustades sellega ulatuslikke epideemiaid. Alates 1994. aastast on Ameerikas igal aastal olnud dengeviiruse puhang. Viirus põhjustab dengepalavikku. Vaatamata viiruse vastu võitlemisele, haigestus aastatel 2001–2005 dengepalavikku 50 000 inimest, kellest 700 suri.

    Miinusahelalised RNA-viirused

    Marutõve patsient

    Marutaudi viirus (Rabies virus)

    Marutaudi seostatakse tavaliselt koerlaste ja teiste imetajatega, nagu skungid ja pesukarud. Tegelikult on marutõve kõige suuremaks looduslikuks reservuaariks aga nahkhiired. Vähestel juhtudel hammustab nahkhiir inimest, tavaliselt satuvad nahkhiire väljaheidete osakesed inimese hingamisteedesse, sellega koos ka viiruspartiklid. Marutõve vastu on proovitud võidelda nahkhiirte massilise hävitamisega, kuid see ei ole andnud soovitud tulemust. Marutõbe saab ravida, kuid seda tehakse ainult arenenud riikidest, sest ravim on kallis.

    Henipaviirus

    Henipaviirus avastati 1994. aastal, kui Austraalias leidis aset kaks suurt puhangut. Esimene neist toimus augustis, kui kaks hobust surid hingamisteede vaegustesse ja nende omanik haigestus samuti. Aasta pärast suri ka omanik entsefaliiti. Teine juhtum toimus 1994. aasta septembris, kui haigestus tiine mära. Ta elas samas tallis veel 23 hobusega, kellest 17 haigestusid ja 13 surid. Kahel ellujäänul tekkisid neuroloogilised kahjustused. Lisaks olid nakatunud veel kolm hobust, kuid neil sümptomeid ei täheldatud. Haigestusid ka kaks inimest, kes hobuste eest hoolitsesid. Üks neist suri hingamisteede- ja neerupuudulikkusesse. Järeldati, et viirus vajab levimiseks lähedast kontakti. Henipaviiruse looduslikuks reservuaariks on lendoravad, teistele organismidele levivad nad harva.

    Marburgi viirus

    Marburgi viirus avastati 1967. aastal, kui toimusid hemorraagilise palaviku haiguspuhangud Marburgis, Frankfurdis ja Belgradis. Haiguse allikaks olid Ugandast pärit ahvi neeru rakud, mida kasvatati koekultuuris. Haigestus 25 laboritöötajat ja sekundaarse nakkusega veel kuus inimest. Seitse neist surid. Pärast seda on esinenud veel mitu looduslikku puhangut, kus letaalsus on olnud 80–90%.

    Ebola viirus

    Ebola viirus on viiruseliik, mis avastati hemorraagilise palaviku epideemia ajal Ebola jõe äärses külas (Sairis) ja Sudaanis (284 haigusjuhtu) 1976. aastal.

    Haigestus üle 600 inimese, kellest 430 surid. Pärast seda on toimunud mitmed Ebola viirushaiguse puhangud üle Aafrika ja on levinud ka teistele mandritele, nagu 2014. aasta Ebola viirushaiguse epideemia.

    Looduslikke Ebola viiruse reservuaare seni veel ei tunta. Peremeesorganismide osas puudub teadlaste hulgas üksmeel, kuid on tuvastatud, et viirus eluneb asümptomaatiliselt osadel nahkhiirtel ning sümptomaatiliselt sigadel, osadel ahvidel ja inimestel.

    Arvatakse, et metsloomad (näiteks antiloobid, mitmed esikloomalised ja närilised (näiteks okassealised) jt ning kodusead ja koerad võivad nakatuda mitmete taimtoiduliste nahkhiirte väljaheidetega kokkupuutunud puuvilju, taimestikku või viirustega kokkupuutunud liha süües ning osad nahkhiired (Hypsignathus monstrosus, Epomops franqueti ja Myonycteris torquata) võivad Ebola viiruse looduslikeks reservuaarideks olla (uuringu käigus tuvastati Ebola viiruse geenide fragmente).

    Gripiviirus

    H5N1 levik maailmas

    20. sajandil põhjustas gripiviirus A (inglise Influenza A) kolm väga suurt pandeemiat. Kõige tõsisem neist oli 1918. aastal, kui nakatus 30% kogu Maa elanikkonnast. Üle 100 miljoni inimese suri. Neid pandeemiaid seostatakse uute pinnaglükoproteiinide (HA ja NA) tekkimisega. Gripiviiruse A looduslikuks reservuaariks on linnud. Selleks, et need viirused saaksid nakatada ka inimesi, peavad nad ümber kohanema.

    • H5N1 – avastati esimest korda Hiinas, kui 1995. aastal surid sellesse haned. Aastate jooksul on viirus rekombineerunud teiste gripiviirustega ja on võimeline nakatama ka inimesi. Viiruse letaalsus on inimese puhul umbes 50%. Siiani levib viirus inimesele vaid lindudelt. Teadlased arvavad, et juhul kui viirus omandab võime levida ka inimeselt inimesele, saaks sellest 21. sajandi üks suuremaid gripipandeemiaid.
    • H7N7 – 2003. aastal oli Hollandis epideemia, kus viirusega nakatus 89 inimest. See viiruse tüvi oli võimeline levima ka inimeselt inimesele. Epideemia peatati kiiresti tänu linnuliha rangele kontrollile.

    Hantaviirus

    Hantaviirused levivad närilistega ja nakatavad inimesi nende väljaheidete kaudu. Hantaviirusi hakati uurima Korea sõja ajal, kui 3000 USA sõdurit haigestusid hemorraagilisse palavikku. Praeguseks on leitud ka Hantaviirusi, mis põhjustavad hingamisteede häireid ja võivad viia äkksurmani.

    Kaheahelalised RNA-viirused

    Rotaviirus

    Inimese rotaviirus nakatab tavaliselt vastsündinuid ja väikelapsi. See põhjustab tugevat kõhulahtisust ja vedelikukaotus võib olla letaalne. Arengumaades on rotaviiruse põhjustatud gastroenteriit märkimisväärne väikelaste surma põhjustaja. Igal aastal põhjustab rotaviirus maailmas kokku 300 000 – 800 000 surma. Väikelastele on välja töötatud ka rotaviiruse vastane vaktsiin, kuid selle mõju ei kesta terve elu.

    Taksonoomia

    Viiruste klassifitseerimisel on levinud kaks meetodit: ICTV (International Comittee on Taxonomy of Viruses) ja Baltimore’i meetod. Baltimore’i klassifikatsiooni järgi jagunevad RNA-genoomsed viirused kolme gruppi: III grupp (dsRNA-viirused), IV grupp (plussahelalised ssRNA-viirused) ja V grupp (miinusahelalised ssRNA-viirused). ICTV järgi jaotatakse viirused seltsidesse, sugukondadesse, alamsugukondadesse ja perekondadesse.

    Selts Mononegavirales (miinusahelalised RNA-viirused)

    Selts Nidovirales (plussahelalised RNA-viirused)

    Selts Picornavirales (plussahelalised RNA-viirused)

    Selts Tymovirales (plussahelalised RNA-viirused)

    Määramata selts (miinusahelalised ssRNA-viirused, plussahelalised ssRNA-viirused ja dsRNA-viirused)